1. Khái quát
Sốt rét là bệnh truyền nhiễm do ký sinh trùng Plasmodium gây ra, chủ yếu truyền qua vết đốt của muỗi cái Anopheles nhiễm ký sinh trùng. Năm loài Plasmodium được công nhận gây bệnh ở người gồm P. falciparum, P. vivax, P. malariae, P. ovale và P. knowlesi. Trong đó, P. falciparum và P. vivax hiện vẫn là hai loài có ý nghĩa y tế công cộng lớn nhất. Theo World Malaria Report 2025, năm 2024 thế giới ước tính có 282 triệu ca sốt rét và 610.000 ca tử vong tại 80 quốc gia có lưu hành sốt rét. Khu vực châu Phi của WHO chiếm khoảng 94% số ca và 95% số tử vong toàn cầu. Điều đáng chú ý là miễn dịch đối với sốt rét không tạo ra sự bảo vệ hoàn toàn và bền vững như miễn dịch đối với nhiều bệnh nhiễm trùng khác. Người đã từng nhiễm vẫn có thể tái nhiễm; qua nhiều lần phơi nhiễm, cơ thể có xu hướng giảm nguy cơ bệnh nặng và giảm mật độ ký sinh trùng máu hơn là loại bỏ hoàn toàn ký sinh trùng.
2. Các cơ chế miễn dịch chống Plasmodium
Có thể phân chia miễn dịch chống sốt rét thành:
- Yếu tố bảo vệ bẩm sinh của vật chủ;
- Miễn dịch bẩm sinh;
- Miễn dịch thích ứng, gồm đáp ứng tế bào T và đáp ứng kháng thể của tế bào B;
- Miễn dịch thụ động từ mẹ sang con;
- Miễn dịch do vắc xin, là hướng phát triển quan trọng trong phòng chống sốt rét hiện nay.
Điểm quan trọng cần nhấn mạnh là các cơ chế này tác động khác nhau ở giai đoạn gan, giai đoạn hồng cầu và giai đoạn giao bào của ký sinh trùng.
3. Yếu tố di truyền và đặc điểm hồng cầu ảnh hưởng đến tính cảm thụ
Một số yếu tố của hồng cầu như hệ Duffy, hemoglobin S/C/E, thalassemia và thiếu G6PD. Ngày nay, các yếu tố này vẫn được xem là những ví dụ quan trọng về tương tác tiến hóa giữa vật chủ và ký sinh trùng, nhưng cần diễn giải thận trọng hơn.
- Hemoglobin và bệnh hồng cầu hình liềm: HbS có liên quan đến khả năng giảm nguy cơ mắc sốt rét nặng do falciparum ở người mang một bản sao HbS. Đây được xem là một trong những ví dụ kinh điển về áp lực chọn lọc của sốt rét đối với quần thể người.
- α-thalassemia và β-thalassemia: Các biến thể thalassemia có sự phân bố cao tại nhiều khu vực từng hoặc đang lưu hành sốt rét. Một số kiểu gen có liên quan đến giảm nguy cơ bệnh sốt rét nặng, nhưng cơ chế bảo vệ không đơn giản và không đồng nhất giữa các kiểu gen.
Thiếu G6PD: có ý nghĩa đặc biệt trong sốt rét vì vừa liên quan đến sinh học của hồng cầu vừa ảnh hưởng trực tiếp đến an toàn điều trị. Đặc biệt, trước khi sử dụng một số thuốc chống tái phát P. vivax/P. ovale, cần xem xét tình trạng G6PD theo hướng dẫn điều trị hiện hành nhằm hạn chế nguy cơ tan máu. Hiện nay, G6PD nên được trình bày đồng thời dưới hai góc độ: sinh học miễn dịch và dược lý/an toàn điều trị.
4. Hệ Duffy và Plasmodium vivax: một quan niệm đã thay đổi
Trước đây ghi nhận người Duffy âm tính không bị nhiễm P. vivax. Quan niệm này không còn được xem là tuyệt đối. Duffy glycoprotein/ACKR1 trên hồng cầu là một thụ thể quan trọng trong con đường xâm nhập hồng cầu của P. vivax. Tuy nhiên, nhiều nghiên cứu đã chứng minh rằng nhiễm P. vivax có thể xảy ra ở người Duffy âm tính. Một tổng quan hệ thống cho thấy hiện tượng này đã được ghi nhận ở nhiều khu vực châu Phi; các nghiên cứu gần đây tiếp tục cung cấp bằng chứng về hiện tượng này. Đặc biệt, một nghiên cứu công bố năm 2025 tại Ấn Độ ghi nhận P. vivax ở người Duffy âm tính và gợi ý khả năng tồn tại các con đường xâm nhập hồng cầu thay thế hoặc sự thích nghi của ký sinh trùng. Một nghiên cứu năm 2026 tại Sudan tiếp tục ghi nhận nhiễm P. vivax ở người Duffy âm tính và cho thấy sự đa dạng di truyền của protein PvDBP, củng cố giả thuyết về khả năng thích nghi của ký sinh trùng.
Duffy âm tính có thể làm giảm tính cảm thụ đối với P. vivax trong một số bối cảnh, nhưng không nên được xem là trạng thái bảo vệ tuyệt đối. Đây là điểm rất quan trọng khi xây dựng nội dung giảng dạy về miễn dịch và dịch tễ học P. vivax.
5. Miễn dịch bẩm sinh
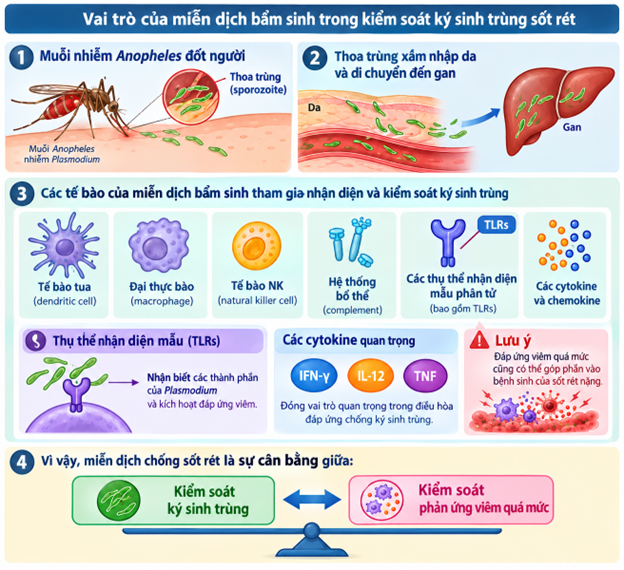
Sau khi muỗi nhiễm Anopheles đốt người, thoa trùng (sporozoite) xâm nhập vào da và nhanh chóng di chuyển đến gan.
Các tế bào của miễn dịch bẩm sinh, bao gồm: tế bào tua, đại thực bào, tế bào NK, hệ thống bổ thể, các thụ thể nhận diện mẫu phân tử, các cytokine và chemokine, tham gia nhận diện và kiểm soát ký sinh trùng.
Các thụ thể nhận diện mẫu, trong đó có các Toll-like receptors (TLRs), giúp nhận biết các thành phần của Plasmodium và kích hoạt đáp ứng viêm.
Các cytokine như IFN-γ, IL-12 và TNF đóng vai trò quan trọng trong điều hòa đáp ứng chống ký sinh trùng. Tuy nhiên, đáp ứng viêm quá mức cũng có thể góp phần vào bệnh sinh của sốt rét nặng.
Do đó, miễn dịch chống sốt rét là sự cân bằng giữa: kiểm soát ký sinh trùng ↔ kiểm soát phản ứng viêm quá mức.
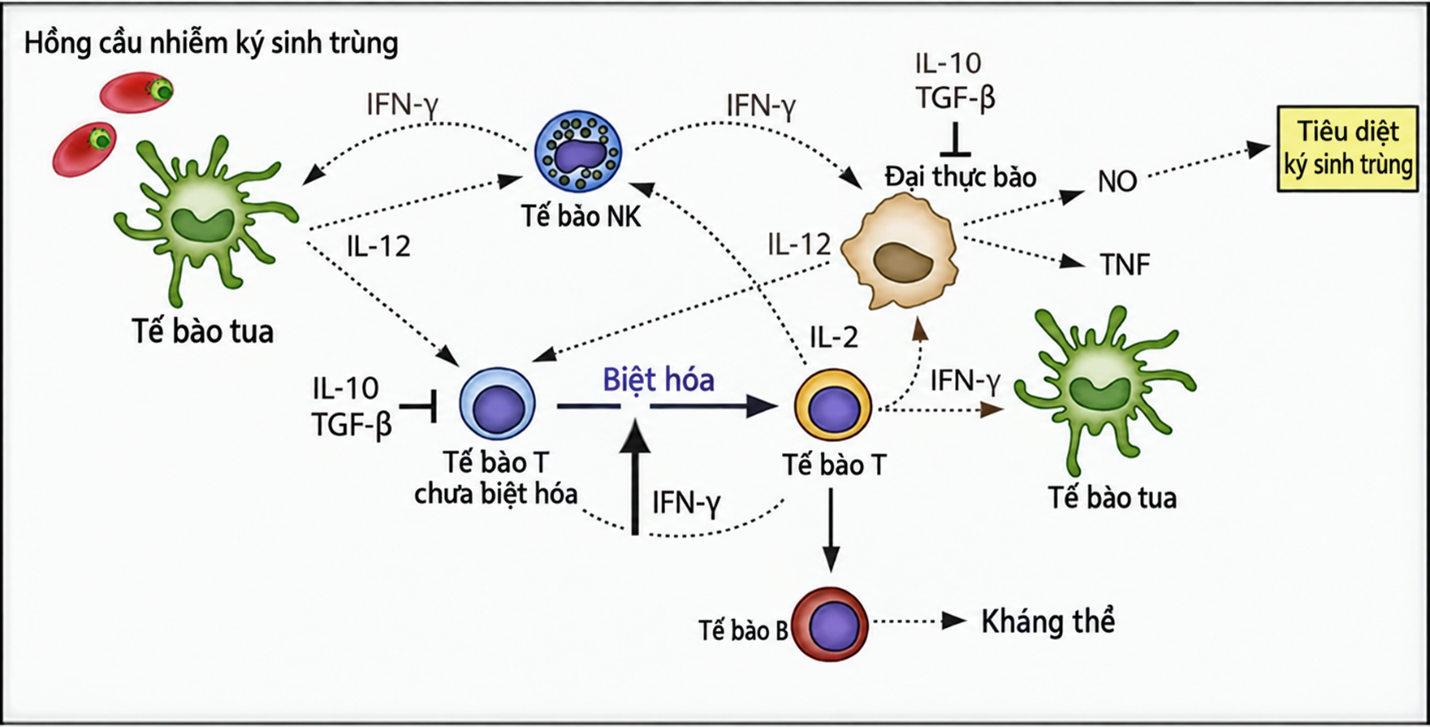
Hình 1. Miễn dịch bẩm sinh của người đối với ký sinh trùng sốt rét
6. Đáp ứng miễn dịch ở giai đoạn gan
Sau khi xâm nhập cơ thể, thoa trùng đi đến gan và xâm nhập tế bào gan. Ở giai đoạn này, đáp ứng miễn dịch tế bào có vai trò quan trọng. Tế bào tua xử lý và trình diện kháng nguyên cho tế bào T, từ đó hoạt hóa các đáp ứng miễn dịch đặc hiệu.
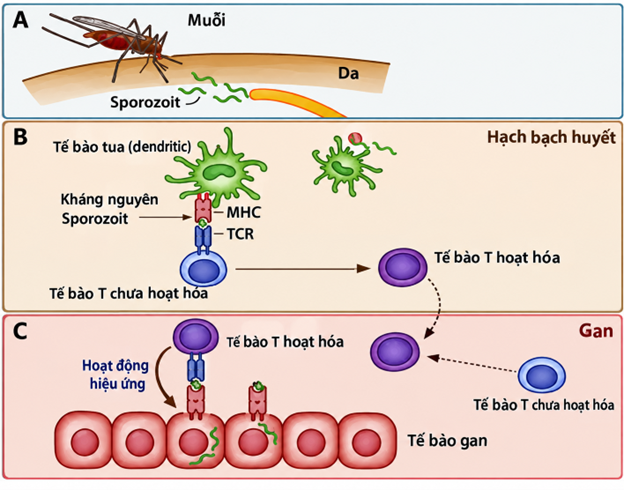
Hình 2. Đáp ứng miễn dịch giai đoạn ở gan đối với KSTSR
Đặc biệt, tế bào T CD8+ có thể nhận diện và tiêu diệt tế bào gan bị nhiễm Plasmodium. Đây là cơ sở miễn dịch học quan trọng của các vắc xin nhắm vào giai đoạn tiền hồng cầu (pre-erythrocytic stage). Sau giai đoạn phát triển trong gan, merozoite được giải phóng vào máu và bắt đầu giai đoạn hồng cầu.
7. Miễn dịch ở giai đoạn hồng cầu
Đây là giai đoạn liên quan trực tiếp nhất đến: ký sinh trùng máu, sốt, thiếu máu, tổn thương cơ quan, sốt rét nặng.
Merozoite xâm nhập hồng cầu, phát triển và nhân lên. Khi hồng cầu nhiễm bị phá vỡ, merozoite tiếp tục xâm nhập các hồng cầu khác.
Hình 3. Đáp ứng miễn dịch giai đoạn ở hồng cầu đối với KSTSR
Kháng thể: Tế bào B tạo ra kháng thể, đặc biệt IgG, chống lại nhiều kháng nguyên của ký sinh trùng.
Kháng thể có thể: ngăn merozoite xâm nhập hồng cầu, opsonin hóa ký sinh trùng, tạo điều kiện cho thực bào, tác động lên các protein bề mặt của hồng cầu nhiễm, làm giảm khả năng bám dính của hồng cầu nhiễm vào nội mô.
Miễn dịch dịch thể vì vậy là thành phần trung tâm của miễn dịch mắc phải đối với giai đoạn máu.
8. Vì sao miễn dịch mắc phải đối với sốt rét phát triển chậm
Một đặc điểm quan trọng của sốt rét là miễn dịch mắc phải thường cần nhiều lần phơi nhiễm mới đạt mức bảo vệ đáng kể. Ở vùng lưu hành, người có nhiều lần nhiễm có thể: giảm mật độ ký sinh trùng, giảm tỷ lệ nhiễm có triệu chứng, giảm nguy cơ sốt rét nặng, tăng khả năng kiểm soát ký sinh trùng máu. Tuy nhiên, tình trạng này thường được gọi là miễn dịch bán phần (partial immunity) hoặc miễn dịch chống bệnh hơn là miễn dịch vô khuẩn hoàn toàn. Điều này giải thích vì sao một người sống lâu năm tại vùng lưu hành có thể nhiễm ký sinh trùng nhưng không biểu hiện bệnh nặng, trong khi trẻ nhỏ hoặc người chưa từng phơi nhiễm có nguy cơ cao hơn.
9. Cơ chế né tránh miễn dịch của Plasmodium
Một trong những phát triển quan trọng của miễn dịch học sốt rét hiện đại là hiểu rõ hơn về khả năng né tránh hệ miễn dịch của ký sinh trùng. Ở P. falciparum, protein PfEMP1 trên bề mặt hồng cầu nhiễm có vai trò đặc biệt quan trọng. PfEMP1 giúp hồng cầu nhiễm: bám vào tế bào nội mô, tránh bị giữ lại và loại bỏ tại lách, hình thành hiện tượng rosetting, góp phần vào bệnh sinh sốt rét nặng, trong đó có sốt rét não. Đặc biệt, PfEMP1 biến đổi kháng nguyên thông qua sự biểu hiện luân phiên của các gene var, giúp ký sinh trùng tránh được đáp ứng kháng thể đã hình thành trước đó. Các nghiên cứu gần đây tiếp tục xác nhận PfEMP1 là một trong những mục tiêu quan trọng của miễn dịch mắc phải và phát triển vắc xin.
10. Tế bào B và kháng thể: quan điểm mới
Các nghiên cứu hiện đại cho thấy miễn dịch dịch thể trong sốt rét phức tạp hơn mô hình “tạo kháng thể → loại bỏ ký sinh trùng”. Sau nhiều lần phơi nhiễm, cơ thể hình thành nhiều quần thể tế bào B khác nhau, bao gồm: tế bào B nhớ, tế bào plasma, các quần thể B không điển hình (atypical B cells). Một số nghiên cứu cho thấy sốt rét có thể gây thay đổi chức năng tế bào B và đáp ứng kháng thể, góp phần giải thích tại sao miễn dịch bảo vệ hình thành tương đối chậm và không hoàn toàn. Đồng thời, các nghiên cứu gần đây cho thấy một số tự kháng thể (autoantibodies) có thể liên quan đến khả năng ức chế tăng trưởng P. falciparum và bảo vệ chống sốt rét lâm sàng, mở rộng cách nhìn về tương tác giữa ký sinh trùng và hệ miễn dịch vật chủ.
11. Miễn dịch tế bào T
Tế bào T có vai trò khác nhau tùy giai đoạn phát triển của ký sinh trùng.
Ở giai đoạn gan: Tế bào T, đặc biệt CD8+, góp phần nhận diện và loại bỏ tế bào gan nhiễm.
Ở giai đoạn máu: CD4+ T cells hỗ trợ (hoạt hóa tế bào B, hình thành kháng thể, điều hòa đại thực bào, kiểm soát đáp ứng viêm). IFN-γ và các cytokine liên quan đến đáp ứng Th1 có vai trò quan trọng trong kiểm soát Plasmodium, nhưng nếu phản ứng viêm mất kiểm soát có thể góp phần vào tổn thương mô và bệnh sốt rét nặng.
12. Miễn dịch thụ động ở trẻ sơ sinh
Kháng thể IgG của mẹ có thể truyền qua nhau thai và tạo bảo vệ thụ động tạm thời cho trẻ. Tuy nhiên, mức độ bảo vệ phụ thuộc: tình trạng miễn dịch của người mẹ, mức độ phơi nhiễm của mẹ, loại kháng thể, đặc điểm kháng nguyên của ký sinh trùng, tuổi của trẻ. Do đó, miễn dịch thụ động không thay thế được các biện pháp phòng bệnh chủ động.
13. Vắc xin sốt rét – bước tiến mới của miễn dịch học
Một thay đổi rất lớn kể từ khi tài liệu gốc được xây dựng là vaccine sốt rét hiện đã trở thành một công cụ phòng bệnh được WHO khuyến cáo sử dụng.
WHO hiện khuyến cáo hai vắc xin: RTS,S/AS01 và R21/Matrix-M cho phòng P. falciparum ở trẻ em sống tại vùng lưu hành sốt rét, ưu tiên những khu vực có mức truyền bệnh trung bình và cao.
Lịch cơ bản gồm 4 liều, bắt đầu từ khoảng 5 tháng tuổi; có thể cân nhắc liều thứ 5 sau liều thứ 4 một năm ở những khu vực nguy cơ tiếp tục cao.
Cả hai vắc xin đều cho thấy giảm hơn 50% số ca sốt rét trong năm đầu sau tiêm; khi triển khai theo mùa ở những khu vực truyền bệnh theo mùa cao, hiệu quả phòng các đợt sốt rét có thể đạt khoảng 75% khi kết hợp với hóa dự phòng theo mùa.
Quan trọng nhất: Vắc xin sốt rét không thay thế màn, hóa chất diệt muỗi, chẩn đoán và điều trị; vắc xinh phải được triển khai như một thành phần của chiến lược phòng chống sốt rét tổng hợp.
TS. Đoàn Bình Minh


